의료 감수: 박석민 한의사 (대표원장)
정맥주사용 면역글로불린(IVIG), 자가면역질환에서 면역 반응과 자가항체를 조절하는 분자생물학적 기전
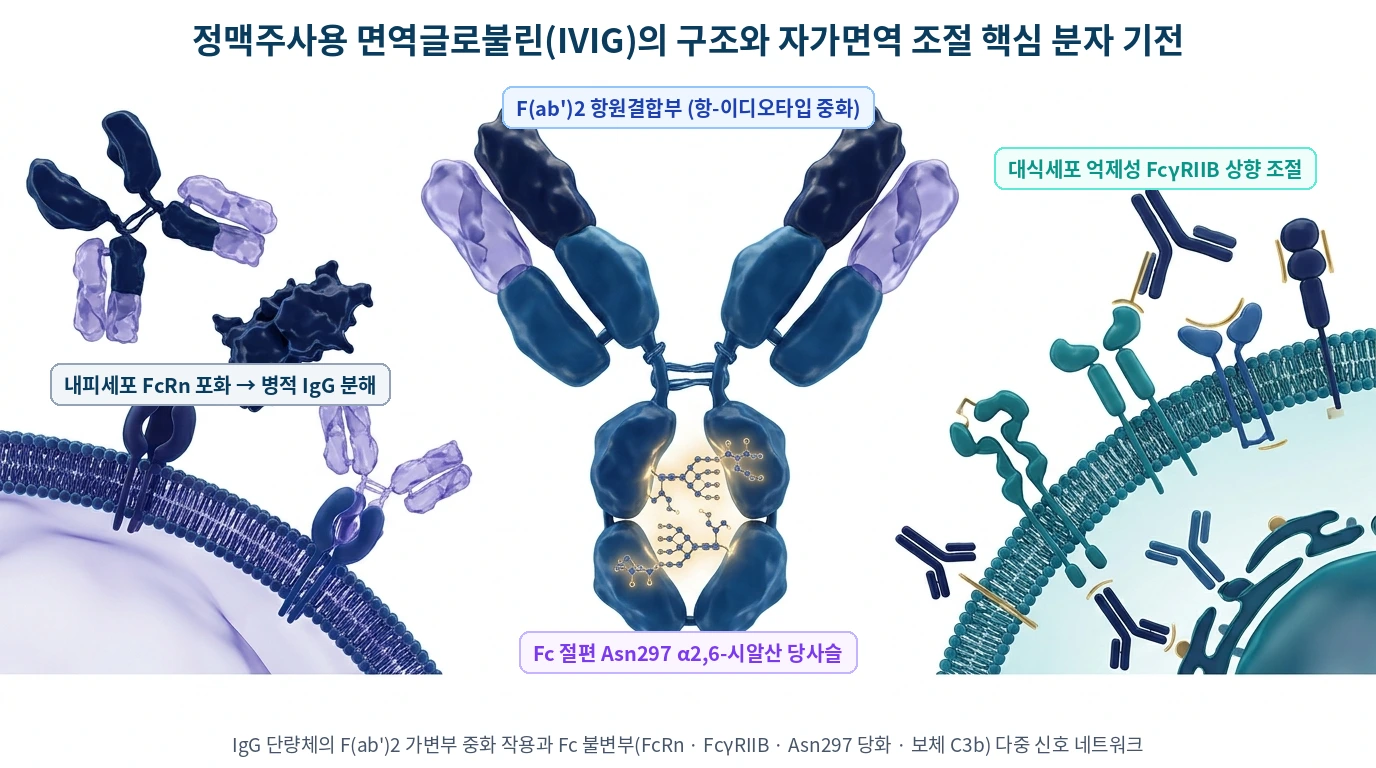
정맥주사용 면역글로불린(IVIG)은 FcRn 포화, 억제성 FcγRIIB 상향 조절, Asn297 시알산화, 보체 C3b 차단, 항-이디오타입 중화를 통해 자가면역 염증을 억제합니다. 최신 분자생물학적 기전과 한계를 정리합니다.
목차
- 다클론성 IgG의 분자 구조와 고용량 투여의 면역학적 전환
- 기전 1: 신생아 Fc 수용체(FcRn)의 경쟁적 포화와 병적 자가항체의 리소좀 분해
- pH 의존성 히스티딘 양성자화 스위치와 IgG 재순환
- 고용량 IVIG에 의한 FcRn 포화와 반감기 단축 역학
- FCGRT 유전자 프로모터 다형성(VNTR)과 약효 지속 기간의 개인차
- 기전 2: 고전적 Fcγ 수용체(Type I FcγR)의 ITAM/ITIM 신호 균형 재편
- SHIP-1 탈인산화효소 모집과 칼슘 신호의 분자적 차단
- 기전 3: Fc 절편 Asn297 당사슬의 α2,6-시알산화와 Type II FcR(DC-SIGN) 경로
- 시알산화에 의한 CH2 입체구조 변화와 DC-SIGN → IL-33 → IL-4 → FcγRIIB 축
- 2024년 최신 연구: Fc 엔지니어링 변이체로 해부한 시알산화와 FcRn 경로의 독립성
- 기전 4: 보체계(Complement) 활성화 산물(C3b, C4b, MAC)의 분자적 스캐빈징
- 기전 5: F(ab')2 매개 자연자가항체(NAbs)와 오토파지·파이롭토시스 조절 (2025~2026 최신 지견)
- 1. 자연자가항체(NAbs)와 항-이디오타입 네트워크 (Danieli MG et al, 2025)
- 2. 선천면역 세포의 자가포식(Autophagy) 유도와 단핵구 상태 정상화 (Singh SC et al, 2026)
- 3. GBP5-NLRP3 인플라마좀-Caspase-1-GSDMD 파이롭토시스 축 차단 (Long Q et al, 2026)
- 분자생물학적 한계: 왜 IgG4 매개 자가면역질환에서는 IVIG 효과가 떨어질까요?
- 투여 시 알아두어야 할 분자적 부작용 기전과 통합적 관리 원칙
- 자주 묻는 질문
- 참고문헌
정맥주사용 면역글로불린(intravenous immunoglobulin, IVIG)은 원래 항체 결핍 환자에게 부족한 면역글로불린을 보충해 주던 약제이지만, 고용량으로 투여할 때 자가항체와 과열된 면역 세포를 동시에 진정시키는 역설적인 항염증 작용을 발휘합니다.
수천 명의 건강한 헌혈자 혈장에서 정제한 다클론성 인간 IgG 제제인 IVIG는 단일 표적만 가로막는 생물학적 제제와 달리, 항체의 가변부인 F(ab')2 항원결합 도메인과 불변부인 Fc 절편(CH2-CH3 도메인 및 Asn297 N-결합 당사슬)을 통해 다중 면역 회로에 동시에 개입합니다. 최근 분자생물학 및 단백체학 연구를 통해 신생아 Fc 수용체(FcRn)의 경쟁적 포화, 억제성 FcγRIIB 신호 유도, α2,6-시알산 당사슬과 DC-SIGN 경로, 보체 C3b 포획, 자연자가항체(NAbs) 중화, 그리고 선천면역 세포의 자가포식(autophagy) 유도와 GBP5-NLRP3 파이롭토시스 억제에 이르는 정교한 기전이 규명되고 있습니다.
이 글에서는 최신 면역학·신경면역학 논문과 실제 원문 도식을 바탕으로 IVIG가 자가면역질환에서 작동하는 분자생물학적 기전 6가지와, 반대로 IgG4 매개 질환에서는 왜 효과가 제한되는지 그 분자적 경계까지 상세히 정리해 보겠습니다.
다클론성 IgG의 분자 구조와 고용량 투여의 면역학적 전환
IVIG 제제는 3,000명에서 10,000명 이상의 건강한 헌혈자 혈장 풀(pool)에서 분리·정제한 면역글로불린으로, 전체 단백질의 95% 이상이 온전한 단량체(monomeric) 인간 IgG로 이루어져 있습니다. 서브클래스(subclass) 분포는 정상 인체 혈청 비율과 유사하게 IgG1이 약 60~70%, IgG2가 약 20~30%, IgG3가 약 5~8%, IgG4가 약 1~4%를 차지하며, 미량의 IgA와 자연적으로 형성된 가역적 IgG 이량체(dimer)가 포함되어 있습니다.
일차성 면역결핍증에서 감염 예방을 위해 투여하는 보충 용량이 체중 kg당 0.4~0.6g 수준인 것과 달리, 길랑-바레 증후군(GBS), 만성 염증성 탈수초성 다발신경병증(CIDP), 중증근무력증(MG), 면역성 혈소판감소증(ITP), 가와사키병, 피부근염 등 자가면역·염증성 질환에서는 체중 kg당 총 1~2g의 고용량(high-dose)을 2~5일에 나누어 정맥 주입합니다.
Dalakas MC (2021)의 약동학 분석에 따르면 체중 kg당 2g의 IVIG를 주입한 뒤 3일이 지나면 환자의 혈청 IgG 농도는 기저치 대비 최대 5배까지 상승하며, 혈액뇌장벽(BBB) 및 혈액신경장벽(BNB)을 통과해 뇌척수액(CSF) 내 IgG 농도 역시 약 2배 증가합니다. 이처럼 초생리적(supraphysiological) 농도로 유입된 IgG 분자들은 자가면역 병리 네트워크의 핵심 매듭들을 단계별로 차단합니다.
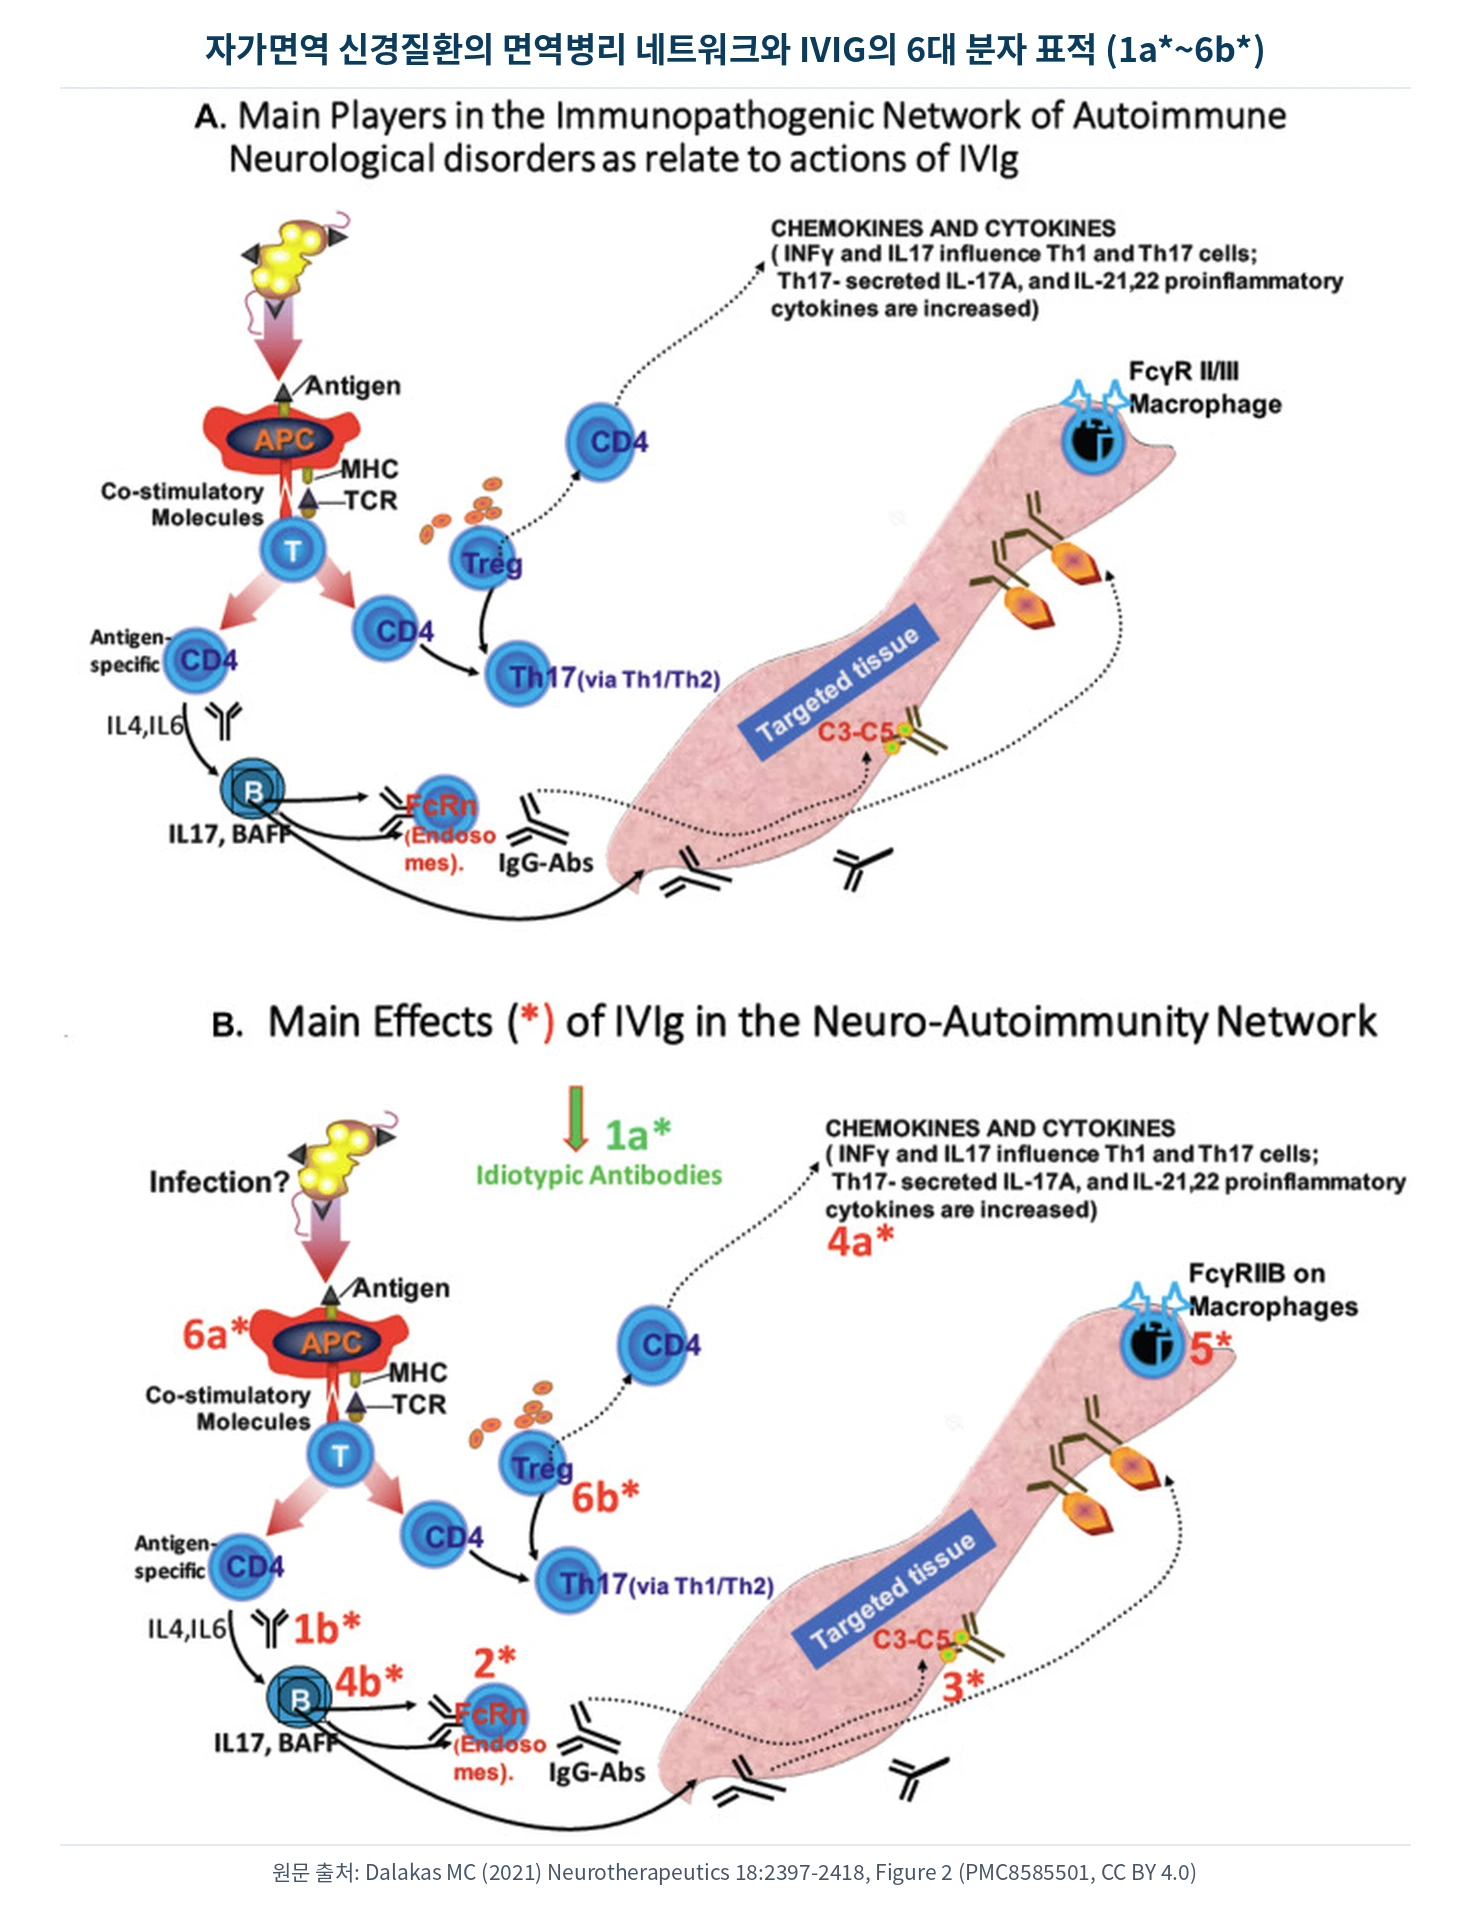
위 Dalakas MC (2021)의 원문 도식(Figure 2)은 자가면역 질환의 발병 네트워크(A)와 IVIG가 개입하는 6대 분자 표적(B의 1a~6b 표적)을 한눈에 보여줍니다.
- 표적 1 (도식의 1a, 1b — 항-이디오타입 중화): 가변부 F(ab')2가 순환 중인 병적 자가항체를 직접 결합해 중화(1a)하거나 B세포 표면 수용체(BCR) 신호를 억제(1b)합니다.
- 표적 2 (도식의 2 — 엔도솜 내 FcRn 포화): 신생아 Fc 수용체(FcRn)를 포화시켜 병적 IgG 자가항체의 리소좀 분해를 가속화합니다.
- 표적 3 (도식의 3 — 보체 연쇄반응 차단): 표적 조직 위에서 활성 보체 단편(C3b~C5b-9 막공격복합체)의 침착을 가로챕니다.
- 표적 4 (도식의 4a, 4b — 염증성 사이토카인 및 BAFF 억제): Th1·Th17 세포가 분비하는 IFN-γ, IL-17A, IL-21, IL-22(4a) 및 B세포 생존 인자인 BAFF(4b)를 하향 조절합니다.
- 표적 5 (도식의 5 — 대식세포 FcγR 조절): 대식세포 표면의 활성형 FcγRII/III를 차단하고 억제성 수용체인 FcγRIIB 발현을 유도합니다.
- 표적 6 (도식의 6a, 6b — 항원제시세포 및 조절 T세포 조절): 항원제시세포(APC)의 공자극 분자 발현을 낮추고(6a), 면역 관용을 담당하는 CD4+CD25+FoxP3+ 조절 T세포(Treg)를 확장(6b)합니다.
기전 1: 신생아 Fc 수용체(FcRn)의 경쟁적 포화와 병적 자가항체의 리소좀 분해
혈액 속 IgG 항체가 알부민을 제외한 다른 혈장 단백질(IgM, IgA 등의 반감기는 약 5~6일)보다 훨씬 긴 약 21~28일의 생체 반감기를 유지할 수 있는 비결은 혈관 내피세포와 골수계 식세포 내부에 존재하는 신생아 Fc 수용체(neonatal Fc receptor, FcRn) 덕분입니다. FcRn은 MHC class I 분자와 구조적으로 유사한 α-사슬과 β2-마이크로글로불린(β2m)으로 이루어진 이종이량체(heterodimer)입니다.
pH 의존성 히스티딘 양성자화 스위치와 IgG 재순환
혈액 속의 IgG는 비특이적 음세포작용(fluid-phase pinocytosis)을 통해 혈관 내피세포의 초기 엔도솜(early endosome) 안으로 끊임없이 흡수됩니다. 이때 IgG의 운명을 결정하는 분자 스위치는 엔도솜 내부의 산성도(pH)와 IgG Fc 절편 CH2-CH3 경계면에 위치한 보존된 히스티딘 아미노산 잔기(His310, His435, His433)입니다.
- 산성 엔도솜(pH 6.0~6.5)에서의 고친화성 결합: 초기 엔도솜이 성숙하면서 양성자 펌프(V-ATPase)에 의해 내부 pH가 6.0 수준으로 낮아지면, IgG CH2-CH3 경계면의 His310 및 His435 이미다졸 고리(pKa 약 6.0)가 양성자화(protonation)되어 양전하(+)를 띱니다. 이 양전하 부위가 FcRn α2 도메인의 음전하 아미노산 잔기(Glu115, Asp130 등)와 강력한 정전기적 염다리(salt bridge)를 형성합니다.
- 리소좀 회피 및 중성 혈액(pH 7.4)에서의 방출: FcRn과 결합한 IgG는 단백질 분해 효소가 가득한 리소좀(lysosome)으로 넘어가지 않고 재순환 소포(recycling vesicle)로 분류되어 세포 표면으로 되돌아갑니다. 세포막 외부의 혈액(pH 7.4)과 만나는 순간 히스티딘 잔기가 탈양성자화되면서 FcRn과의 친화도가 즉시 소실되어 온전한 IgG가 혈액 속으로 다시 풀려납니다.
고용량 IVIG에 의한 FcRn 포화와 반감기 단축 역학
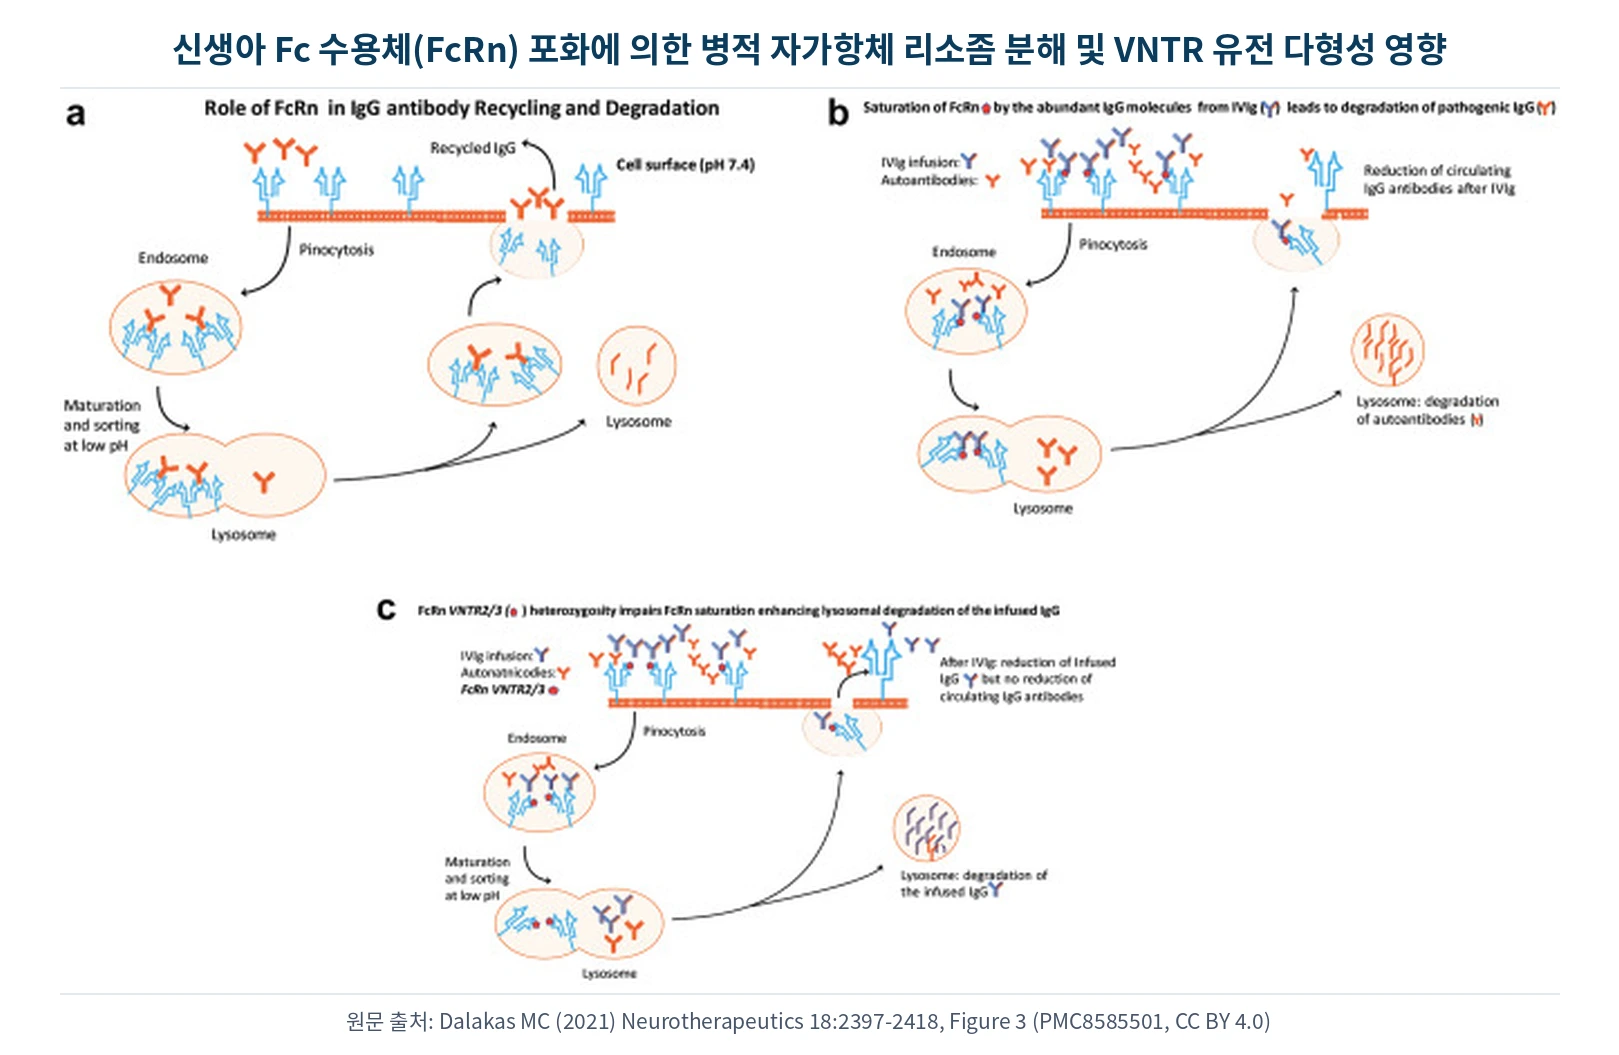
자가면역질환 환자의 몸 안에서는 정상 IgG뿐만 아니라 신경, 근육, 혈소판을 공격하는 병적 IgG 자가항체도 똑같이 FcRn의 보호를 받아 리소좀 분해를 피하고 수주 동안 혈액 속을 순환합니다(위 원문 Figure 3의 a).
여기에 고용량 IVIG(2g/kg)를 투여해 외인성 정상 IgG 분자를 대량으로 쏟아부으면, 내피세포 엔도솜 안의 한정된 FcRn 수용체가 정상 IgG 분자들에 의해 경쟁적으로 포화(saturation)됩니다(Figure 3의 b). FcRn 결합 부위를 차지하지 못한 내인성 병적 자가항체들은 보호막을 잃고 리소좀으로 직행해 아미노산으로 분해됩니다.
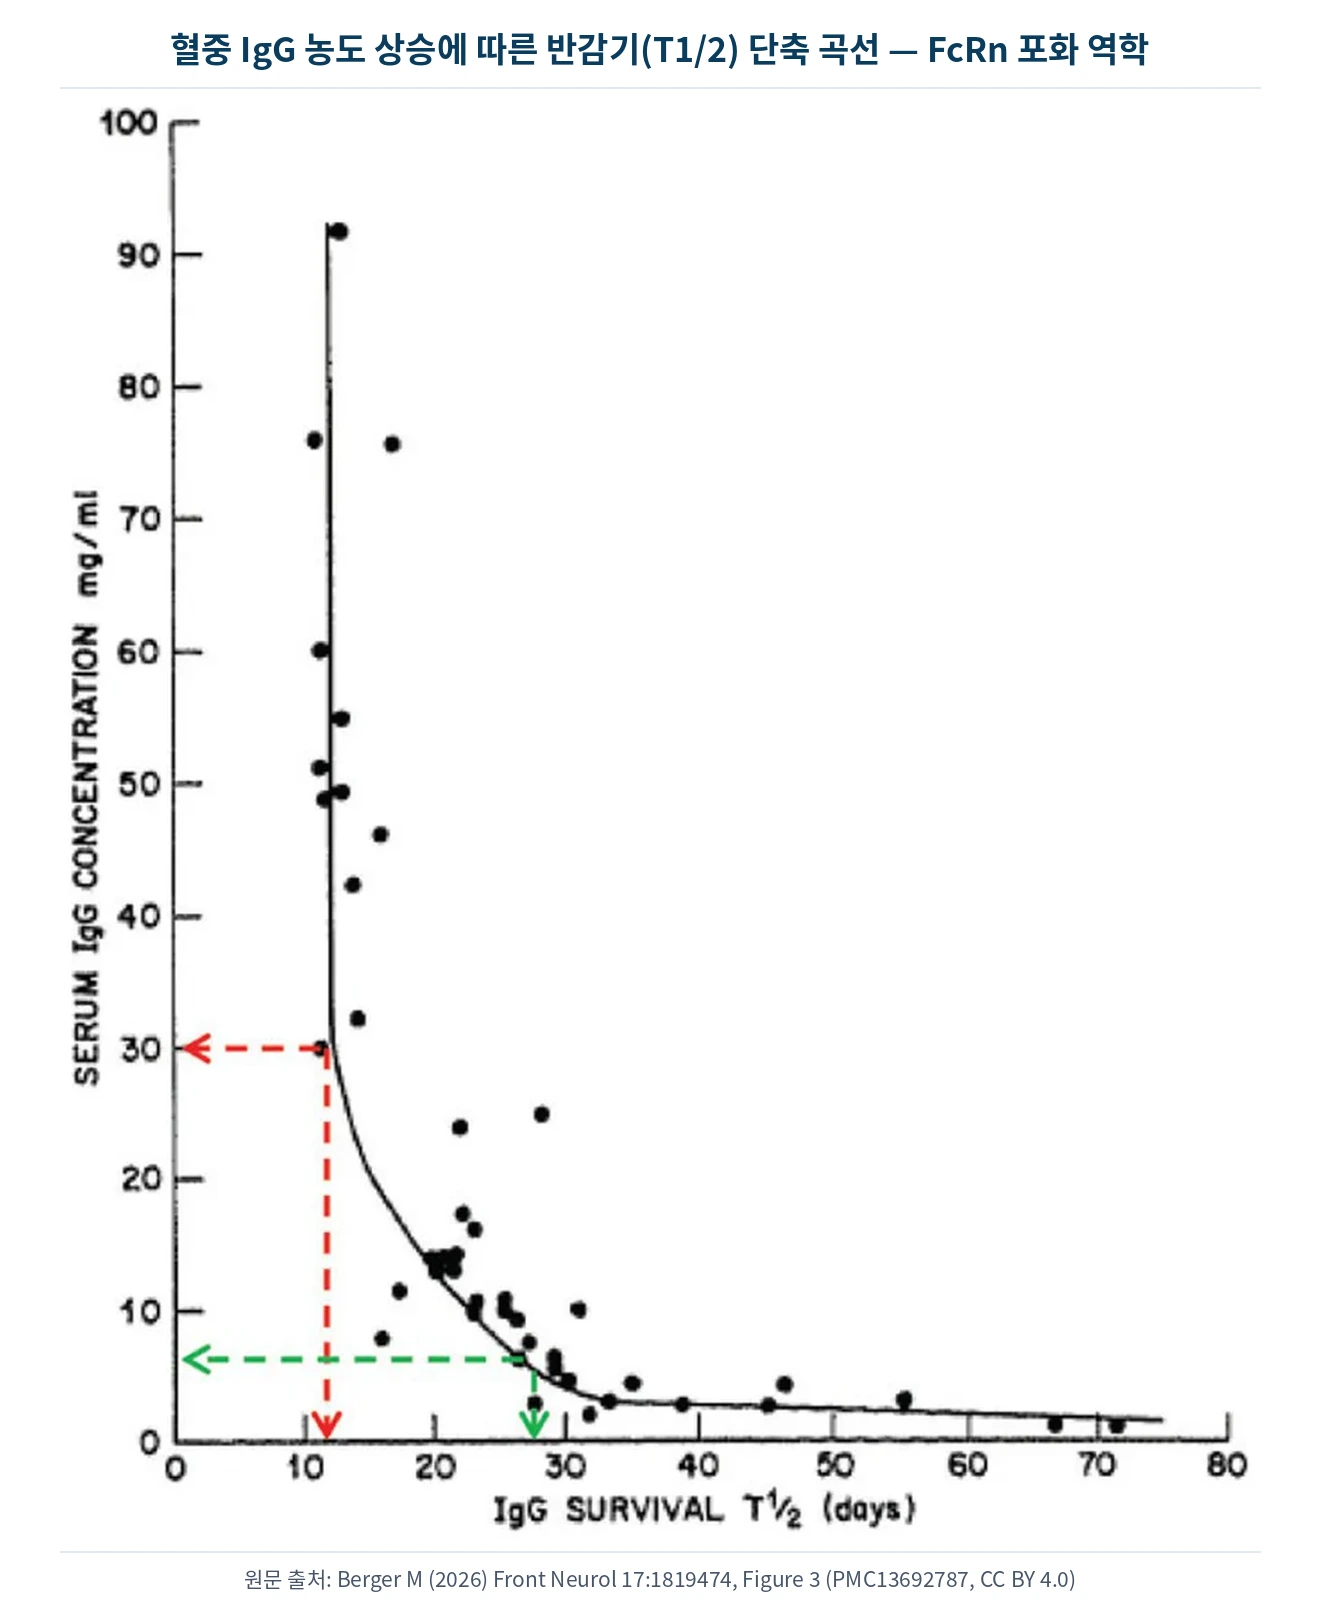
Berger M (2026)이 제시한 위 약동학 곡선(Figure 3)을 보면, 혈청 IgG 농도가 정상 범위인 8mg/mL(800mg/dL, 초록색 점선)일 때 IgG 생존 반감기(T1/2)는 약 28일이지만, 고용량 IVIG 투여 후 혈청 농도가 30mg/mL(3,000mg/dL, 빨간색 점선) 이상으로 올라가면 FcRn 수송 용량이 한계에 도달해 반감기가 약 11~12일로 급격히 짧아집니다.
이처럼 FcRn 포화에 의한 이화작용(catabolism) 가속은 혈중 병적 자가항체 농도를 수일에서 수주에 걸쳐 약 40~70% 낮추는 핵심 기전이며, 최근 중증근무력증과 CIDP 치료에 도입된 신약 에프가티지모드(efgartigimod)나 니포칼리맙(nipocalimab) 같은 FcRn 표적 차단제가 바로 이 원리를 분자적으로 모사한 것입니다.
FCGRT 유전자 프로모터 다형성(VNTR)과 약효 지속 기간의 개인차
모든 환자가 동일한 용량의 IVIG에 똑같은 기간 동안 반응하지 않는 이유 역시 분자유전학적으로 설명됩니다(Dalakas 2021 Figure 3의 c). FcRn의 중쇄를 암호화하는 FCGRT 유전자 프로모터 부위에는 37개 염기쌍으로 이루어진 가변 연쇄 반복 서열(VNTR, variable number of tandem repeats) 다형성이 존재합니다.
가장 흔한 대립유전자인 VNTR3/3 동형접합 환자에 비해, 프로모터 활성이 낮은 VNTR2/3 이형접합을 가진 환자는 단핵구와 내피세포에서 발현되는 FcRn 단백질의 절대량이 적습니다. 그 결과 주입된 IVIG 자체가 엔도솜에서 충분히 재순환되지 못하고 리소좀에서 빨리 소모되어, 다음 주사 전 약효가 일찍 떨어지는 소실 현상(wear-off effect)을 겪을 가능성이 더 높습니다.
기전 2: 고전적 Fcγ 수용체(Type I FcγR)의 ITAM/ITIM 신호 균형 재편
자가항체가 표적 세포나 조직에 결합한 뒤 실제 조직 파괴를 일으키는 주된 집행자는 대식세포(macrophage), 호중구(neutrophil), 자연살해세포(NK cell) 표면에 발현된 고전적 제1형 Fcγ 수용체(Type I FcγR)입니다.
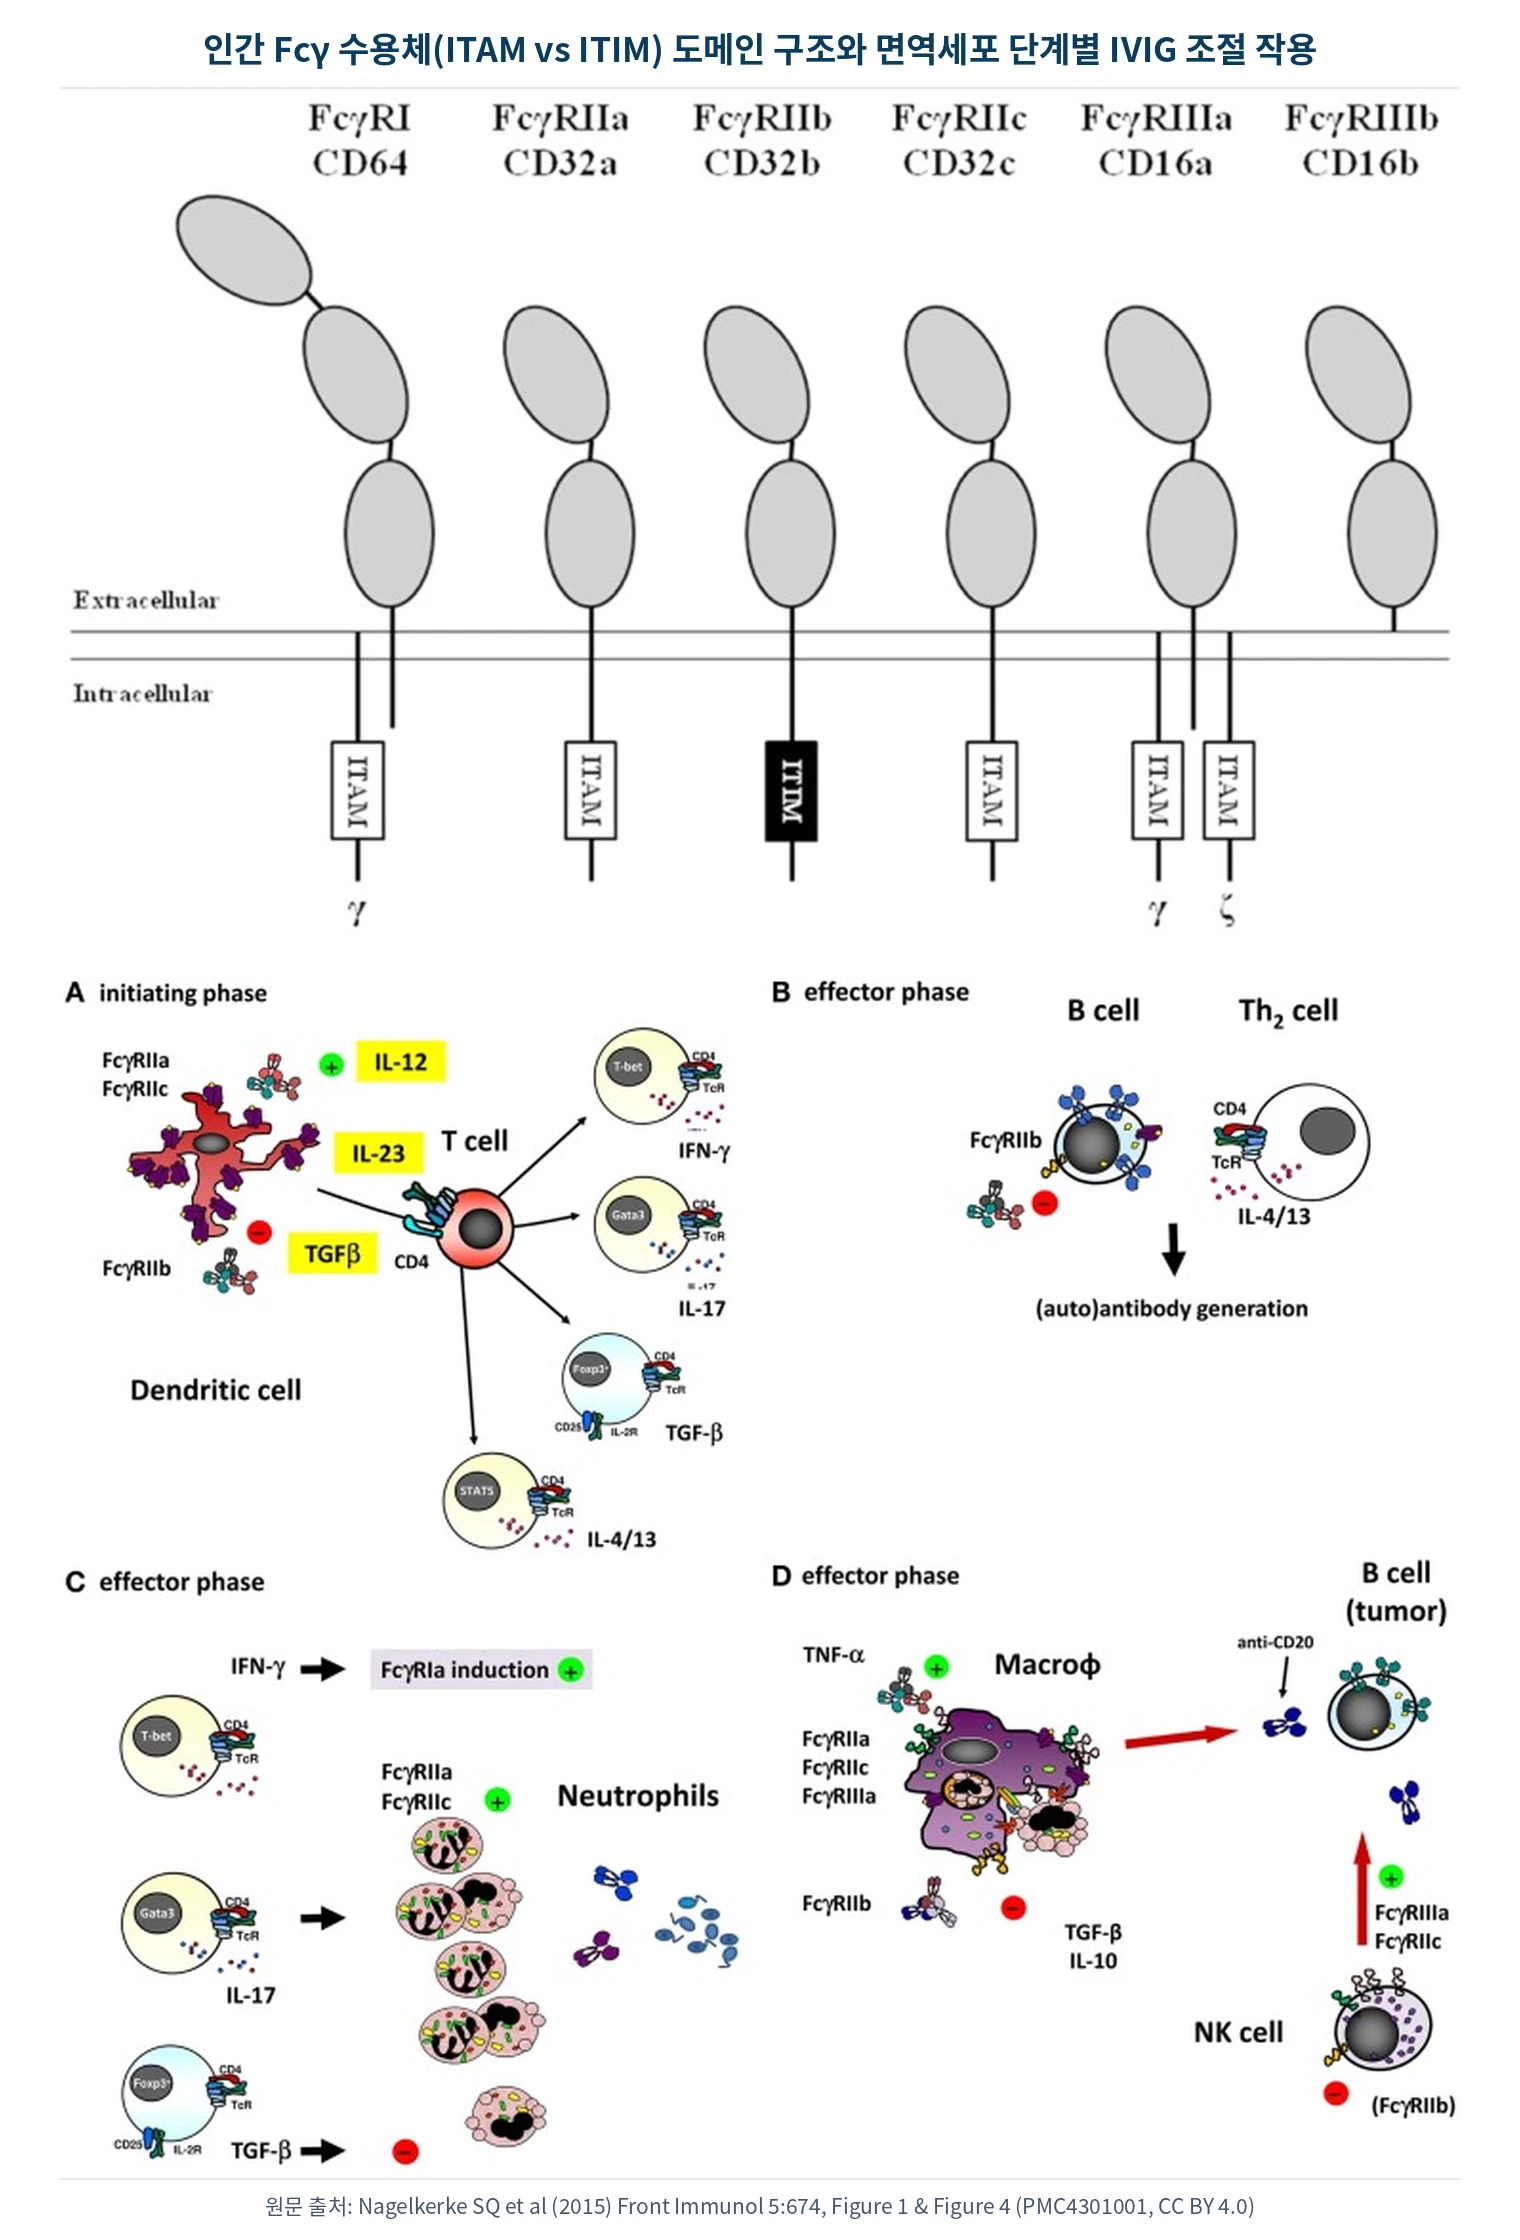
Nagelkerke SQ et al (2015)의 원문 도식(위 그림 상단)에서 볼 수 있듯, 인간의 Fcγ 수용체 가족은 세포 내부로 전달하는 신호의 성질에 따라 두 진영으로 나뉩니다.
- 활성형 Fcγ 수용체 (FcγRI/CD64, FcγRIIA/CD32a, FcγRIIC/CD32c, FcγRIIIA/CD16a): 세포질 꼬리 부분이나 회합된 γ/ζ 사슬에 ITAM(immunoreceptor tyrosine-based activation motif)을 가지고 있습니다. 면역복합체(항원-자가항체 결합체)가 이 수용체들을 교차결합시키면 Src 계열 키나아제가 ITAM의 티로신을 인산화하고, 이어서 Syk(spleen tyrosine kinase)가 모집·활성화됩니다. Syk는 PI3K(포스포이노시타이드 3-키나아제) → PIP3 생성 → BTK 및 PLCγ2 활성화 → IP3 및 세포내 칼슘 이온(Ca²⁺) 급증으로 이어지는 연쇄 신호를 일으켜 항체의존성 세포독성(ADCC), 탐식작용(phagocytosis), 활성산소(ROS) 및 염증성 사이토카인(TNF-α, IL-1β, IL-6) 방출을 촉발합니다.
- 유일한 억제형 Fcγ 수용체 (FcγRIIB/CD32b): 세포질 도메인에 활성화 모티프 대신 ITIM(immunoreceptor tyrosine-based inhibition motif)을 보유한 유일한 브레이크 수용체입니다.
SHIP-1 탈인산화효소 모집과 칼슘 신호의 분자적 차단
고용량 IVIG는 두 가지 단계로 이 수용체 균형을 역전시킵니다(위 그림 하단 A~D). 첫째, 고농도의 단량체 IgG와 소량의 가역적 IgG 이량체가 대식세포와 호중구 표면의 활성형 FcγRIIA 및 FcγRIIIA를 물리적으로 점유하여 자가항체 면역복합체가 결합할 틈을 차단합니다.
둘째, 더욱 중요한 변화로 수지상세포, B세포, 대식세포 표면에서 억제성 수용체인 FcγRIIB의 발현을 선택적으로 상향 조절합니다. 표면에 늘어난 FcγRIIB가 활성형 FcγR 또는 B세포 수용체(BCR)와 함께 교차결합하면, Lyn 키나아제가 FcγRIIB의 ITIM 도메인 티로신을 인산화합니다. 인산화된 ITIM에는 이노시톨 탈인산화효소인 SHIP-1(SH2 domain-containing inositol 5'-phosphatase-1)과 단백질 탈인산화효소인 SHP-1이 결합합니다.
모집된 SHIP-1은 세포막의 핵심 신호 지질인 PIP3(포스파티딜이노시톨 3,4,5-삼인산)의 5번 인산기를 가수분해하여 PI(3,4)P2로 전환시킵니다. 세포막에서 PIP3가 사라지면 PH 도메인을 통해 막에 결합하던 BTK와 PLCγ2, Akt가 세포막에서 떨어져 나가면서 하위 칼슘 유입과 NF-κB, MAPK 전사인자 활성화가 근본적으로 정지됩니다. 실제 CIDP 환자에게 IVIG를 투여해 임상적 호전이 나타난 후 혈액 내 단핵구와 B세포를 분석하면, 치료 전 낮아져 있던 FcγRIIB 발현량이 정상 수준 이상으로 회복된 것이 확인됩니다.
기전 3: Fc 절편 Asn297 당사슬의 α2,6-시알산화와 Type II FcR(DC-SIGN) 경로
고용량(1~2g/kg)의 IVIG가 왜 필요한가에 대한 가장 매혹적인 분자생물학적 해답 중 하나는 IgG 중쇄의 당화(glycosylation) 미세 구조에서 나왔습니다. 모든 인간 IgG 중쇄의 CH2 도메인 안쪽에는 297번 아스파라긴(Asn297) 잔기가 보존되어 있으며, 여기에 N-아세틸글루코사민(GlcNAc)과 만노오스(mannose)를 기본 골격으로 하는 복합형 바이안테나(biantennary) 당사슬(N-glycan)이 양쪽 사슬 사이에 마주 보며 매달려 있습니다.
정상 혈장 IgG에서 이 Asn297 당사슬의 대다수는 시알산이 없는 상태(asialylated)이거나 갈락토오스가 결핍된 형태(G0, G1)이며, 당사슬 양쪽 끝에 α2,6-결합 시알산(sialic acid, Neu5Ac)이 온전히 부착된 분획은 전체 IVIG 중 약 1~3%(완전한 사중 시알산화 기준 0.5~1%)에 불과합니다.
시알산화에 의한 CH2 입체구조 변화와 DC-SIGN → IL-33 → IL-4 → FcγRIIB 축
Asn297 당사슬 끝에 α2,6-시알산이 결합하면, 거대하고 음전하를 띤 시알산 잔기가 CH2 도메인 내부의 소수성 아미노산(특히 Phe241, Phe243)과 상호작용하면서 CH2-CH3 도메인의 3차원 입체구조(conformation)를 미세하게 변형시킵니다. 이 입체구조 변화는 두 가지 극적인 결과를 낳습니다.
- 고전적 제1형 Fcγ 수용체(Type I FcγR)에 대한 결합 친화도는 오히려 감소합니다.
- 대신 C-형 렉틴 수용체 계열인 제2형 Fc 수용체(Type II FcR: 인간의 DC-SIGN, 마우스의 SIGN-R1, B세포의 CD23)에 결합할 수 있는 새로운 결합 표면이 열립니다.
비장 변연부(marginal zone)나 말초 조직의 조절성 대식세포·수지상세포 표면에 존재하는 DC-SIGN(또는 SIGN-R1)에 α2,6-시알산화 IgG Fc가 결합하면, 해당 세포에서 알라민(alarmin) 사이토카인인 IL-33이 분비됩니다. 분비된 IL-33은 인터루킨-1 수용체 계열인 ST2를 발현하는 호염기구(basophil)와 선천성 림프구(ILC2)를 자극하여 IL-4와 IL-13을 방출하게 만들고, 이 IL-4가 최종적으로 염증 현장의 효과기 대식세포에 작용하여 앞서 설명한 억제성 수용체 FcγRIIB의 유전자 전사와 표면 발현을 대폭 끌어올려 자가면역 염증을 잠재웁니다.
2024년 최신 연구: Fc 엔지니어링 변이체로 해부한 시알산화와 FcRn 경로의 독립성
Sneed SL et al (2024)은 Journal of Clinical Investigation에 발표한 연구에서, 유전자 재조합 기술로 설계한 두 가지 인간 IgG1 Fc 변이체를 이용해 IVIG의 항염증 경로를 정밀하게 분리해 냈습니다.
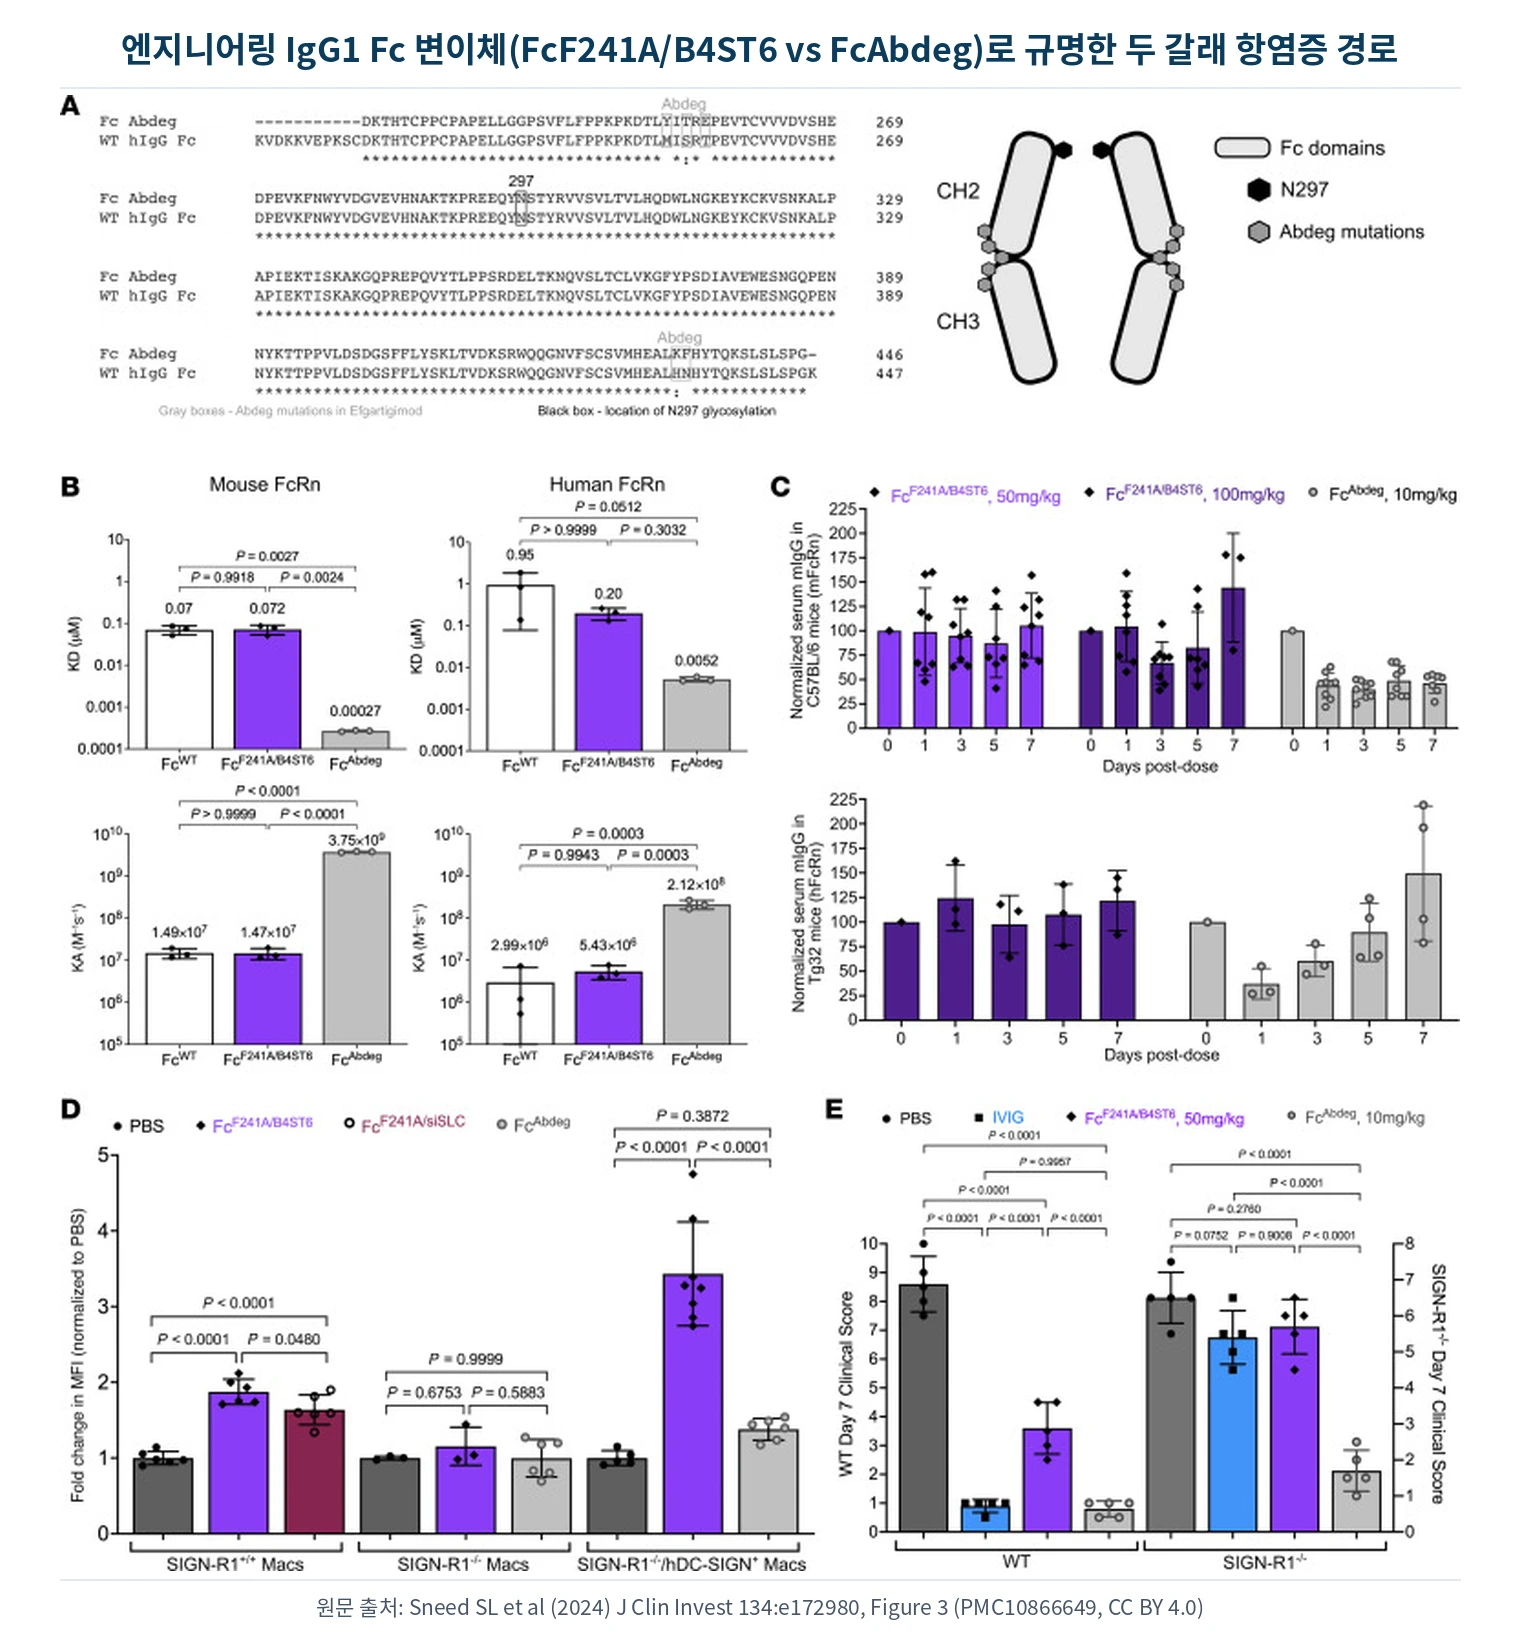
위 원문 Figure 3은 두 가지 엔지니어링 Fc 분자의 구조와 실험 결과를 비교한 것입니다.
- 제2형 FcR 경로 모사 변이체 (FcF241A/B4ST6): IgG1 Fc의 241번 페닐알라닌을 알라닌으로 치환(F241A)하여 시알산화 IgG와 동일한 입체구조 변화(DC-SIGN 및 SIGN-R1 결합능)를 유도한 뒤, β1,4-갈락토실전이효소(B4GALT1)와 α2,6-시알산전이효소(ST6GAL1)를 공동 발현시켜 시알산화를 완성한 분자입니다.
- FcRn 초고친화성 차단 변이체 (FcAbdeg, 에프가티지모드 서열): CH2-CH3 경계면의 5개 아미노산(Met252Tyr, Ser254Thr, Thr256Glu, His433Lys, Asn434Phe; 일명 MST-HN 변이)을 치환한 분자입니다(Figure 3A).
실험 결과는 분자생물학적으로 매우 중요한 세 가지 사실을 증명했습니다.
- FcRn 친화도와 혈중 IgG 제거의 분리 (Figure 3B, 3C): 인간 FcRn에 대한 해리상수(KD)를 측정했을 때, 야생형 IgG1 Fc는 0.95μM, FcF241A/B4ST6는 0.20μM인 반면, FcAbdeg는 0.0052μM로 약 180배 강력한 결합력을 보였습니다. 그 결과 FcAbdeg(10mg/kg)는 투여 직후 내인성 혈중 IgG 농도를 절반 이하로 급감시켰으나, FcF241A/B4ST6(50~100mg/kg)는 혈중 IgG 농도를 전혀 낮추지 않았습니다.
- SIGN-R1/DC-SIGN 및 FcγRIIB 의존성의 분리 (Figure 3D, 3E): FcF241A/B4ST6는 야생형 마우스와 인간 DC-SIGN 형질전환 마우스의 대식세포에서 억제성 수용체 발현을 1.9배~3.4배 증가시키며 관절염 임상 점수를 낮추었지만, SIGN-R1 유전자가 결손된 마우스에서는 항염증 효과가 완전히 사라졌습니다. 반대로 FcAbdeg는 SIGN-R1이 없는 마우스에서도 내인성 병적 항체를 제거하여 염증을 강력히 억제했습니다.
- 시알산의 진짜 생체 내 역할 규명: 연구진은 F241A 아미노산 치환만으로도 이미 수용체 결합에 필요한 입체구조가 형성되지만, 당사슬 끝에 시알산이 없으면 간세포의 아시알로당단백질 수용체(ASGPR)에 포획되어 혈액에서 빠르게 제거된다는 사실을 밝혔습니다. 즉 시알산 부착은 수용체 결합 구조 형성뿐 아니라 생체 내 반감기와 생체이용률을 유지하여 항염증 신호가 지속되도록 돕는 핵심 보호막 역할을 합니다. 나아가 두 변이체(FcF241A/B4ST6 25mg/kg + FcAbdeg 5mg/kg)를 병용 투여했을 때 단일 경로만 표적할 때보다 훨씬 뛰어난 시너지 항염증 효과가 확인되었습니다.
기전 4: 보체계(Complement) 활성화 산물(C3b, C4b, MAC)의 분자적 스캐빈징
항-아세틸콜린수용체(AChR) 항체 양성 중증근무력증, 급성 운동 축삭 신경병증(AMAN), 피부근염(dermatomyositis) 같은 질환에서는 자가항체(주로 IgG1과 IgG3)가 표적 세포막에 결합한 뒤 혈액 속 보체 단백질 C1q를 고정하면서 파괴적인 고전적 보체 경로(classical complement pathway)가 가동됩니다.
C1 복합체가 활성화되면 C4와 C2가 절단되어 C3 전환효소(C4b2a)가 만들어지고, 이는 대량의 C3를 절단하여 활성형 C3b를 생성합니다. C3b는 내부의 반응성 티오에스테르(thioester) 결합이 노출되면서 수초(myelin)나 근육 미세혈관 내피세포, 신경근접합부 시냅스 후막 표면에 공유 결합으로 달라붙고, 연이어 C5 전환효소를 거쳐 최종 산물인 C5b-9 막공격복합체(membrane attack complex, MAC)를 조립해 세포막에 물리적인 구멍을 뚫어 조직을 용해시킵니다.
고용량 IVIG는 이 보체 폭포의 가장 치명적인 증폭 단계를 가로막습니다.
- 활성 C3b 및 C4b의 액상 포획(Scavenging): 고농도로 주입된 IVIG의 Fc 절편(특히 CH2 및 CH3 도메인의 보체 수용 부위)은 혈장 및 조직 간질액 속에서 방금 절단되어 반응성이 높은 활성 C3b와 C4b 단편을 자신의 Fc 절편에 대신 공유 결합시킵니다. 이를 통해 C3b·C4b가 환자의 신경이나 근육 세포막 표면에 안착하는 것을 물리적으로 빼앗아 버립니다.
- C1q 경쟁 및 C3 전환효소 불안정화: IVIG는 표적 조직에 붙은 자가항체에 C1q가 결합하는 과정을 경쟁적으로 방해하고, C3 전환효소의 증폭 고리를 차단하여 하류의 C5a(강력한 염증세포 화학주성 인자) 생성과 C5b-9 막공격복합체(MAC) 침착을 억제합니다.
Dalakas MC (2021)가 정리한 피부근염 환자 조직 생검 연구에 따르면, IVIG 투여 후 불과 2~3일 만에 혈중 활성 C3b의 소비가 멈추고 근육 내피세포 표면의 C5b-9(MAC) 침착과 세포간 부착분자(ICAM-1) 발현이 극적으로 소실되면서 모세혈관 재생과 근력 회복이 일어납니다. 이는 FcRn 포화에 의한 항체 감소(수일~수주 소요)보다 훨씬 빠르게 나타나는 IVIG의 대표적인 초기 급성기 작동 기전입니다.
기전 5: F(ab')2 매개 자연자가항체(NAbs)와 오토파지·파이롭토시스 조절 (2025~2026 최신 지견)
Fc 절편이 수용체와 보체를 조절한다면, 항체의 두 팔에 해당하는 F(ab')2 가변부는 수천 명의 헌혈자 면역 기억이 농축된 거대한 자연자가항체(Natural Autoantibodies, NAbs) 및 항-이디오타입(anti-idiotype) 레퍼토리로 작동합니다. 여기에 더해 2025~2026년 최신 분자생물학 연구들은 IVIG가 선천면역 세포 내부의 자가포식(autophagy)과 파이롭토시스(pyroptosis, 염증성 세포사멸) 경로를 직접 재설계한다는 사실을 밝혀냈습니다.
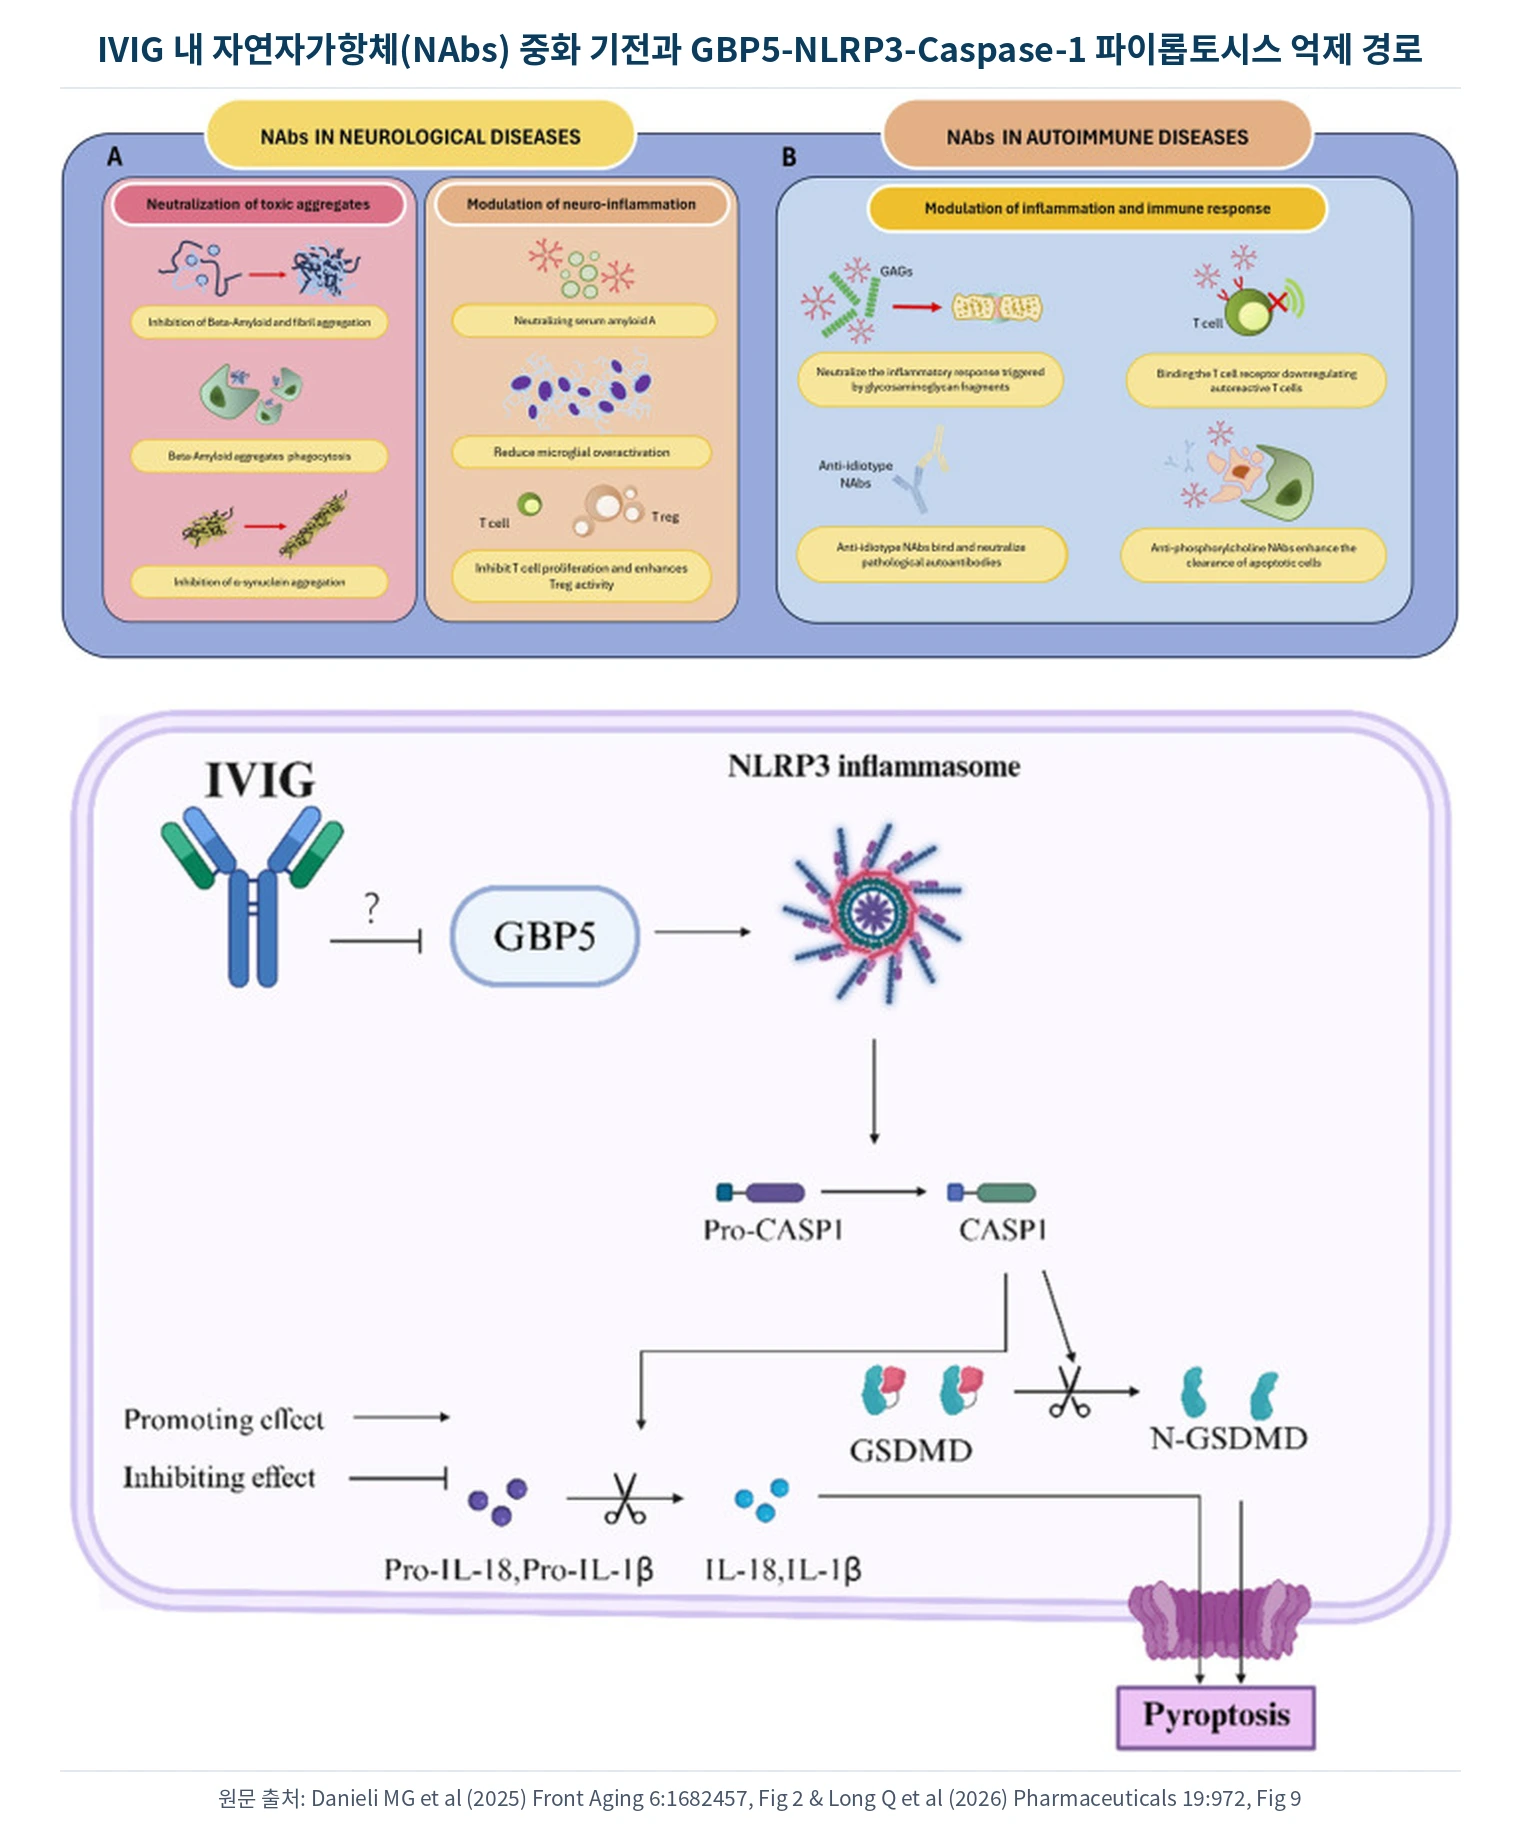
1. 자연자가항체(NAbs)와 항-이디오타입 네트워크 (Danieli MG et al, 2025)
Danieli MG et al (2025)이 Frontiers in Aging에 발표한 논문에 따르면(위 그림 상단), 건강한 사람의 혈액에서 유래한 IVIG 속 자연자가항체(NAbs)는 생리적 면역 항상성을 지키는 다기능 조절자입니다.
- 항-이디오타입(Anti-idiotype) 중화: IVIG 내 특정 항체의 가변부(paratope)가 환자 자가항체의 항원결합 부위(idiotype)를 열쇠와 자물쇠처럼 인식하여 이량체(idiotypic-anti-idiotypic dimer)를 형성함으로써 자가항체가 자기 조직 항원에 결합하지 못하도록 중화합니다. 또한 자가반응성 B세포 표면의 면역글로불린(BCR)에 결합해 클론 증식을 멈추게 합니다.
- 염증성 사이토카인 및 BAFF·APRIL 직접 중화: IVIG에는 IL-1α, IL-1β, IL-6, TNF-α, IFN-α, GM-CSF뿐만 아니라 B세포 생존과 성숙에 필수적인 BAFF(B-cell activating factor) 및 APRIL에 결합하는 자연항체가 포함되어 있어, 자가반응성 B세포의 생존 신호를 직접 차단합니다.
- 세포사멸 수용체(Fas/CD95) 및 Siglec-8/9 조절: IVIG는 과활성화된 호중구 표면의 Siglec-9 및 호산구 표면의 Siglec-8에 결합하여 염증 세포의 자가사멸(apoptosis)을 유도하는 한편, 독성 표피 괴사용해(TEN) 등에서는 각질형성세포의 Fas(CD95)-FasL 결합을 차단해 조직 괴사를 막는 양방향 조절을 수행합니다. 또한 항-포스포릴콜린(anti-phosphorylcholine) 자연항체는 사멸된 세포 잔해물의 청소(efferocytosis)를 촉진하여 2차 자가항원 노출을 줄입니다.
- 조절 T세포(Treg) 확장과 Tregitope: IgG의 가변부 및 불변부 내에 존재하는 고도로 보존된 펩타이드 서열인 Tregitope(T-cell epitopes in IgG)가 항원제시세포(수지상세포)의 MHC class II 분자에 탑재되어 제시되면, 수지상세포에서 프로스타글란딘 E2(PGE2), IL-10, TGF-β 분비가 유도됩니다. 이로 인해 면역 억제 기능을 가진 CD4+CD25+FoxP3+ 조절 T세포(Treg)가 증식하고, 병원성 Th17 세포(IL-17A 분비)와의 균형이 정상화됩니다.
2. 선천면역 세포의 자가포식(Autophagy) 유도와 단핵구 상태 정상화 (Singh SC et al, 2026)
2026년 Frontiers in Immunology에 발표된 Singh SC et al (2026)의 단일세포 전사체 및 기능 연구는 IVIG가 선천면역 세포 내부의 품질 관리 시스템인 자가포식(autophagy)을 어떻게 작동시키는지 규명했습니다.
급성 염증 상태에서는 고전적·중간형·비고전적 단핵구(monocyte), 저밀도 호중구(LDN), NK세포, γδ T세포 사이의 염증성 신호 통신이 과열되고 자가포식 유전자 발현이 억제되어 있습니다. IVIG 투여 후 환자의 말초혈액 면역세포를 분석한 결과, 단핵구 아형 전반에서 ATG5, ATG7, BECN1(Beclin-1), MAP1LC3B(LC3B) 등 핵심 자가포식 유전자와 SQSTM1(p62), OPTN, NBR1, CALCOCO2(NDP52) 같은 선택적 자가포식 수용체 발현이 회복되면서 단핵구의 염증성 분화 궤적(pseudotime state)이 정상 상태로 되돌아왔습니다.
특히 시험관 내(in vitro) 기전 검증에서 IVIG는 처리 후 시간 의존적으로 세포 내 LC3-II 단백질 전환(자가포식소체 형성 지표)을 강력하게 유도했는데, 놀랍게도 Fc 절편만 분리하거나 C-형 렉틴 수용체를 차단해도 자가포식 유도가 그대로 유지된 반면 F(ab')2 절편만으로도 동일한 자가포식이 유도되었습니다. 즉 IVIG의 F(ab')2 도메인이 면역세포 표면 수용체와 직접 상호작용하여 세포 내 자가포식을 가동하고 손상된 미토콘드리아와 염증 복합체를 청소한다는 새로운 분자 기전이 확인된 것입니다.
3. GBP5-NLRP3 인플라마좀-Caspase-1-GSDMD 파이롭토시스 축 차단 (Long Q et al, 2026)
2026년 Pharmaceuticals에 발표된 Long Q et al (2026)의 정량 단백체학(proteomics) 연구는 IVIG가 조직 파괴적 염증 세포사멸인 파이롭토시스(pyroptosis)를 막는 구체적인 분자 경로를 최초로 제시했습니다(위 paper-fig6.webp 하단 원문 Figure 9).
자가면역·염증 손상 조직에서는 인터페론 유도성 GTP 가수분해효소인 GBP5(guanylate-binding protein 5)가 과발현되어 선천면역 센서인 NLRP3 인플라마좀(inflammasome)의 조립을 촉진합니다. 조립된 NLRP3 인플라마좀은 비활성 효소인 Pro-Caspase-1을 활성형 Caspase-1으로 절단하고, 활성화된 Caspase-1은 두 가지 파괴적 작업을 수행합니다.
- 세포 내 가스더민 D(GSDMD) 단백질을 절단하여 N-말단 활성 절편(N-GSDMD)을 방출시킵니다. N-GSDMD는 세포막 지질에 결합해 거대한 구멍(pore)을 뚫어 세포를 팽창·파열시키는 파이롭토시스를 일으킵니다.
- 전구체 상태인 Pro-IL-1β와 Pro-IL-18을 절단하여 강력한 활성 염증 사이토카인인 IL-1β와 IL-18로 성숙시킨 뒤 세포막 구멍을 통해 외부로 대량 방출합니다.
Long Q et al (2026)의 실험에서 IVIG 투여는 상류의 GBP5 단백질 및 mRNA 발현을 직접 억제하여 NLRP3 → Caspase-1 → N-GSDMD 절단 연쇄반응을 차단했고, 조직 내 활성 IL-1β 수치를 유의하게 낮추어 점막 상피 장벽과 조직 구조를 보호했습니다.
분자생물학적 한계: 왜 IgG4 매개 자가면역질환에서는 IVIG 효과가 떨어질까요?
IVIG가 모든 자가면역질환에서 만능으로 작동하는 것은 아닙니다. 임상 현장에서 자가항체의 서브클래스가 IgG1 또는 IgG3인 질환(전형적 CIDP, 길랑-바레 증후군, AChR 항체 양성 중증근무력증, 면역성 혈소판감소증 등)은 IVIG에 70~80% 이상의 높은 반응률을 보이는 반면, 병적 항체가 IgG4 서브클래스인 질환들은 유독 IVIG에 거의 반응하지 않거나 불응성을 보입니다.
대표적인 IgG4 매개 자가면역질환으로는 MuSK(근육특이 티로신 키나아제) 항체 양성 중증근무력증, 랑비에 결절 부위를 공격하는 자가면역 결절병증(항-NF155, 항-CNTN1, 항-CASPR1 항체), 피부 수포 질환인 천포창(항-데스모글레인 항체), LGI1 및 CASPR2 자가면역 뇌염, 그리고 IgG4 연관 질환(IgG4-RD) 등이 있습니다.
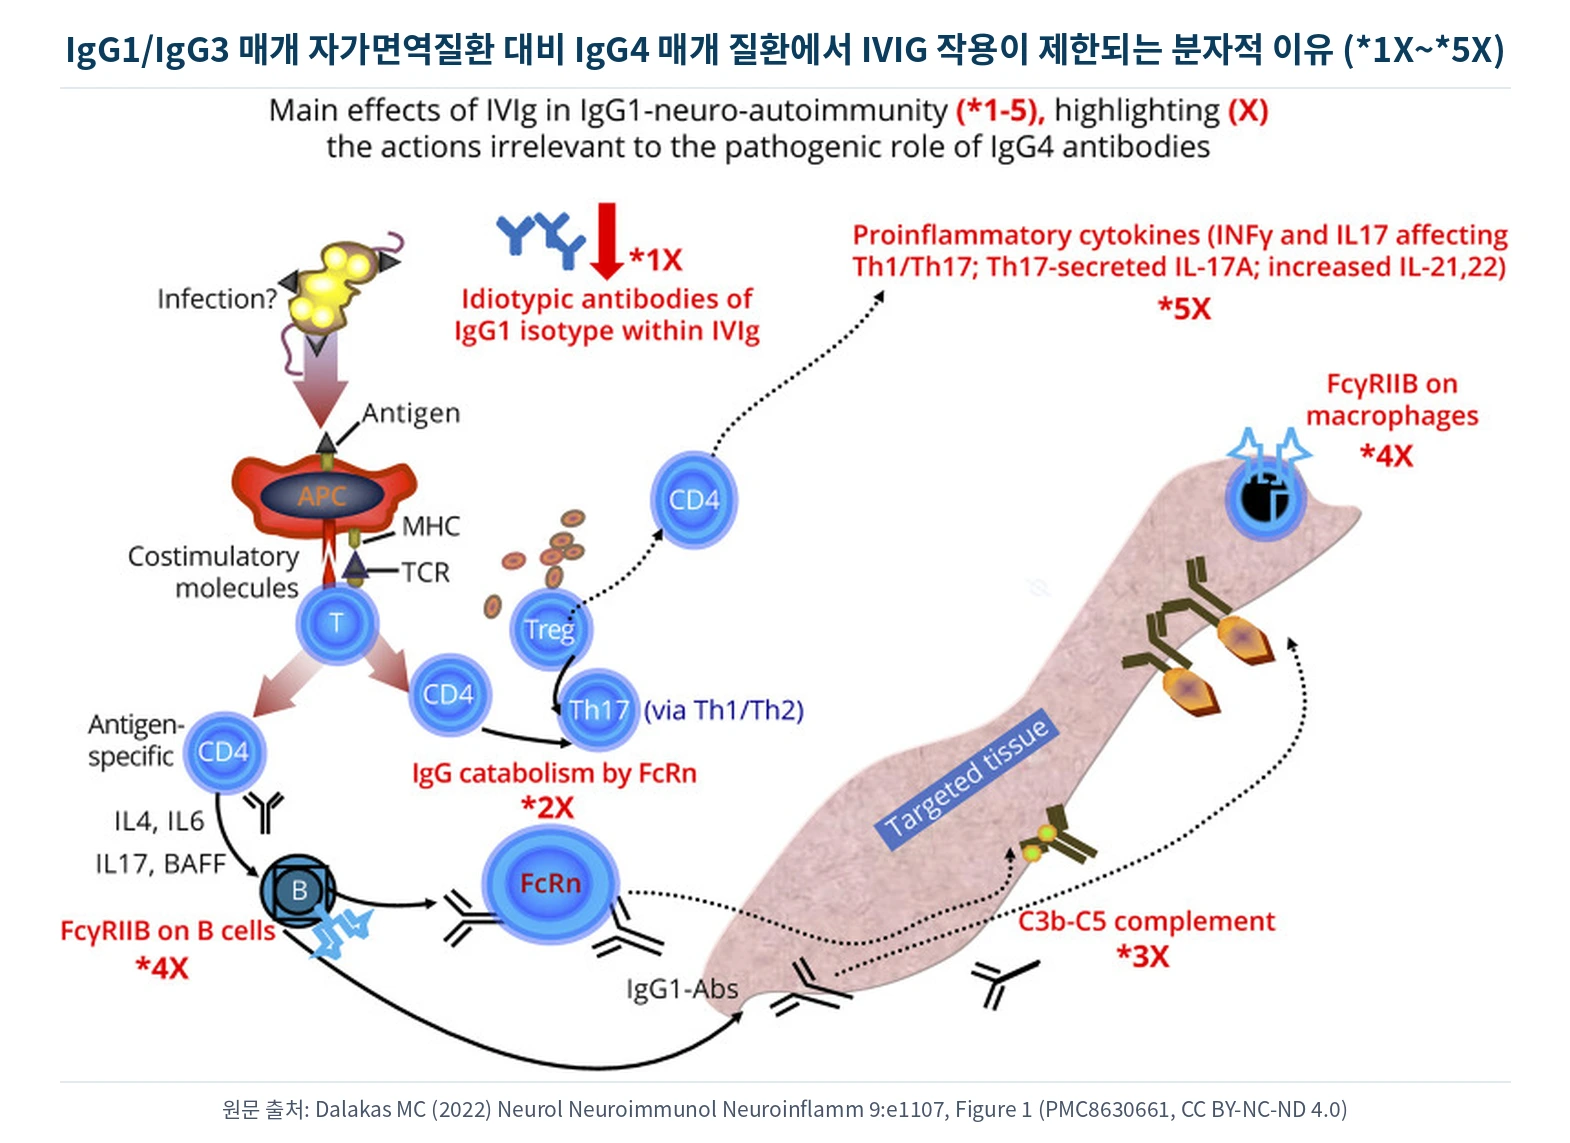
Dalakas MC (2022)는 Neurology: Neuroimmunology & Neuroinflammation에 발표한 논문과 원문 도식(위 Figure 1의 1X~5X 표시)을 통해 그 분자생물학적 이유 5가지를 명쾌하게 규명했습니다.
- 이유 1 — 동적 Fab-arm exchange(절편 팔 교환)와 기능적 단가성: IgG4는 힌지(hinge) 부위의 코어 아미노산 서열에서 IgG1의 프롤린(Pro228) 대신 세린(Ser228)을 가지고 있어 두 중쇄를 연결하는 이황화 결합(disulfide bond)이 불안정하며, CH3 도메인 간의 비공유 결합력도 약합니다. 이로 인해 혈액 속에서 IgG4 분자 두 개가 각자의 절반 분자(중쇄 1개 + 경쇄 1개)를 서로 맞바꾸는 Fab-arm exchange가 일어납니다. 그 결과 체내 순환하는 IgG4는 한쪽 팔과 다른 쪽 팔이 서로 다른 항원을 인식하는 이중특이적(bispecific)·기능적 단가(functionally monovalent) 항체가 되어, 표적 항원을 교차결합(cross-linking)하거나 내재화하지 않고 오직 물리적으로 수용체 결합만 가로막는 방식으로 병을 일으킵니다.
- 이유 2 — 보체 C1q 결합 불능 (도식의 3X): IgG4의 CH2 도메인 입체구조는 보체 C1q와 결합하지 못합니다. 따라서 IgG4 매개 질환에서는 애초에 C3b 침착이나 C5b-9 막공격복합체(MAC)에 의한 조직 파괴가 일어나지 않으므로, IVIG의 핵심 무기인 보체 스캐빈징 작용이 아무런 치료적 이점을 발휘하지 못합니다.
- 이유 3 — 고전적 Fcγ 수용체 비결합 (도식의 4X): IgG4는 대식세포나 NK세포의 활성형 Fcγ 수용체(FcγRIIA, FcγRIIIA)에 대한 친화도가 극히 낮아 ADCC나 식작용을 유도하지 않습니다. 따라서 IVIG가 대식세포의 억제성 FcγRIIB를 상향 조절하더라도 IgG4의 병원성 차단 기전에는 영향을 주지 못합니다.
- 이유 4 — IVIG 제제 내 IgG4 항-이디오타입 항체의 결핍 (도식의 1X): 건강한 헌혈자 혈장에서 만든 IVIG는 IgG1(60~70%)과 IgG2(20~30%)가 대부분이고 IgG4 분획은 1~4% 미만에 불과합니다. 따라서 환자의 병적 IgG4 자가항체를 인식해 중화할 수 있는 동종이형 항-이디오타입 항체가 IVIG 안에 거의 들어 있지 않습니다.
- 이유 5 — 단명 형질아세포(Short-lived plasmablast)의 지속적 생산 (도식의 2X, 5X): IgG4 자가항체는 IL-4, IL-10 환경에서 CD20 양성 기억 B세포로부터 분화한 단명 형질아세포가 쉴 새 없이 만들어냅니다. FcRn 포화로 혈중 항체를 일시적으로 일부 분해하더라도 생산 속도를 따라잡기 어려우며, 염증성 Th1·Th17 사이토카인 억제로도 제어가 되지 않아 이러한 IgG4 질환에서는 IVIG 대신 리툭시맙(rituximab) 같은 항-CD20 B세포 제거 요법이 1차 표적 치료로 선택됩니다.
투여 시 알아두어야 할 분자적 부작용 기전과 통합적 관리 원칙
고용량 IVIG는 전신 면역계를 광범위하게 억제하지 않으면서 자가면역 염증을 조절한다는 큰 장점이 있지만, 고농도 면역글로불린 단백질이 혈관 내로 급격히 유입되는 특성상 몇 가지 주의해야 할 생리적·분자적 이상반응이 있습니다.
- 혈장 점도 상승과 혈전색전증(Thromboembolism): 고용량 주입 후 혈청 단백질 농도가 급증하면 혈액의 점도(viscosity)가 높아지고 적혈구 연전 현상(rouleaux formation)이 촉진되며, 제제 내 미량 잔류할 수 있는 활성 제11혈액응고인자(Factor XIa)가 내인성 응고 경로를 자극할 수 있습니다. Chen J et al (2026)과 Fang S et al (2026)의 분석에서도 고령, 기존 심혈관 위험인자, 과응고 성향이 있는 자가면역 환자에서는 주입 속도를 천천히 조절하고 충분한 수분을 공급하며 필요시 피하주사용 면역글로불린(SCIG)으로 전환하는 전략이 강조됩니다.
- 무균성 수막염(Aseptic meningitis) 및 두통: 뇌척수액 내로 침투한 고농도 IgG가 수막 혈관 내피 및 대식세포와 상호작용하여 국소 사이토카인 방출과 일시적 수막 자극을 일으킬 수 있으며, 주입 속도 감속과 수액 보충으로 예방·완화합니다.
- 수동 전달 동종응집소에 의한 용혈 반응: 헌혈자 풀에서 유래한 소량의 항-A, 항-B 혈액형 항체(isoagglutinin)가 A형·B형·AB형 수혈자의 적혈구 표면에 결합해 FcγR 매개 일시적 용혈을 유발할 수 있으므로 고용량 투여 후 혈색소 수치 추이를 확인합니다.
따라서 IVIG 치료 여부의 결정, 용량 및 투여 주기 설정, 그리고 IgG4 아형 검사를 통한 표적 치료제(리툭시맙, FcRn 차단제 등)로의 전환 판단은 반드시 신경과·류마티스내과·혈액내과 담당 전문의의 진료를 통해 이루어져야 합니다.
이레한의원은 대학병원에서 IVIG나 면역조절제 표준 치료를 받고 계신 자가면역질환 환자분들이 표준 치료를 안전하게 유지하시는 것을 최우선 원칙으로 삼습니다. 특히 3~4주 간격의 IVIG 정맥 주사 주기 말기에 혈중 IgG 농도가 내려가면서 피로감이나 말초 저림·시림, 근육 뻣뻣함이 다시 올라오는 구간(wear-off 구간)이나, 급성기 면역 치료 이후 남는 만성적인 자율신경 실조·수면장애·점막 건조증을 겪으실 때, 복용 중인 약물과 최근 혈액검사(간·신장 기능, 혈구 수치, 면역글로불린 수치) 기록을 바탕으로 약물 상호작용 없이 전신 컨디션과 말초 순환을 보조하는 통합 관리를 도와드리고 있습니다.
자주 묻는 질문
Q. IVIG는 면역억제제처럼 내 몸의 정상 면역력까지 떨어뜨려 감염 위험을 높이나요?
A. 스테로이드나 세포독성 면역억제제와는 작동 방식이 다릅니다. IVIG는 면역세포를 사멸시키거나 골수 조혈 기능을 억누르는 약이 아니라, 수천 명의 헌혈자가 가진 정상 항체를 보충해 주면서 FcRn 포화와 FcγRIIB 신호 조절로 병적 자가항체만 선택적으로 빨리 분해하고 과열된 대식세포에 브레이크를 걸어 주는 면역조절제(immunomodulator)입니다. 오히려 정상적인 병원체 방어 항체를 함께 공급해 주기 때문에, 일반적인 면역억제제에 비해 기회감염 위험이 현저히 낮다는 것이 중요한 분자적 장점입니다.
Q. 왜 IVIG 주사를 맞으면 처음 며칠 만에 힘이 돌아오기도 하고, 또 3~4주가 지나면 효과가 떨어지나요?
A. 초기 급성 회복은 보체(C3b·MAC) 포획과 대식세포 FcγR 차단 덕분이고, 3~4주 뒤 효과가 줄어드는 것은 주입된 IgG의 생체 반감기(약 21~28일) 때문입니다. 주사 직후에는 고농도 IgG가 신경·근육 표면에 침착되던 보체 C3b를 즉각 가로채고 대식세포의 공격 스위치를 끄기 때문에 수일 내에 증상이 호전됩니다. 하지만 시간이 지나면서 주입된 외인성 IgG가 체내에서 대사되어 혈중 농도가 내려가면, 포화되었던 FcRn이 다시 풀리고 억제성 FcγRIIB 발현도 서서히 줄어들어 증상이 재발할 수 있습니다. 특히 FCGRT 유전자의 VNTR 다형성에 따라 약물 소실 속도에 개인차가 나타납니다.
Q. 요즘 새로 나온 에프가티지모드(비브가트) 같은 FcRn 차단제 주사와 기존 IVIG는 분자적으로 어떤 차이가 있나요?
A. FcRn 차단제는 IVIG의 여러 기전 중 「FcRn 포화를 통한 병적 IgG 분해」 한 가지를 약 100배 이상 정밀하게 극대화한 표적 치료제입니다. Sneed SL et al (2024)과 Berger M (2026)의 연구에서 보듯, 에프가티지모드는 IgG1의 Fc 절편에 5개의 아미노산 변이(MST-HN)를 도입해 FcRn에 초고친화성으로 결합함으로써 적은 용량으로도 혈중 병적 IgG를 빠르게 제거합니다. 반면 전통적인 IVIG는 FcRn 포화 외에도 보체 C3b 직접 포획, α2,6-시알산-DC-SIGN-FcγRIIB 상향 조절, F(ab')2 자연자가항체 중화, GBP5-NLRP3 인플라마좀 억제 등 다중 경로를 동시에 수행하므로, 질환의 병리 기전이 복합적일 때는 여전히 광범위한 조절 효과를 지닙니다.
참고문헌
- Dalakas MC (2021) Update on Intravenous Immunoglobulin in Neurology: Modulating Neuro-autoimmunity, Evolving Factors on Efficacy and Dosing and Challenges on Stopping Chronic IVIg Therapy. Neurotherapeutics 18:2397-2418
- Dalakas MC (2022) IgG4-Mediated Neurologic Autoimmunities: Understanding the Pathogenicity of IgG4, Ineffectiveness of IVIg, and Long-Lasting Benefits of Anti-B Cell Therapies. Neurol Neuroimmunol Neuroinflamm 9:e1107
- Berger M (2026) Polyclonal IgG therapy in neurologic and neuromuscular disease: mechanisms of action and insights from newer therapies. Front Neurol 17:1819474
- Sneed SL et al (2024) An engineered immunomodulatory IgG1 Fc suppresses autoimmune inflammation through pathways shared with i.v. immunoglobulin. J Clin Invest 134:e172980
- Nagelkerke SQ et al (2015) Immunomodulation by IVIg and the Role of Fc-Gamma Receptors: Classic Mechanisms of Action after all? Front Immunol 5:674
- Danieli MG et al (2025) Natural autoantibodies and their functional therapeutic roles in intravenous immunoglobulin. Front Aging 6:1682457
- Singh SC et al (2026) Intravenous immunoglobulin remodels innate immune cell communication and induces differential autophagy pathways in Kawasaki disease. Front Immunol 17:1753478
- Long Q et al (2026) Intravenous Immunoglobulin Reveals a Novel Protective Mechanism: Targeting the GBP5-Driven Pyroptosis Axis in Experimental Colitis. Pharmaceuticals (Basel) 19:972
- Washburn N et al (2015) Controlled tetra-Fc sialylation of IVIg results in a drug candidate with consistent enhanced anti-inflammatory activity. Proc Natl Acad Sci U S A 112:E1297-E1306
- Chen J et al (2026) Evaluating the association between intravenous immunoglobulin and thromboembolic events in patients with autoimmune diseases: a retrospective real-world study. Front Pharmacol 17:1742819
- Fang S et al (2026) Thromboembolic risk in subcutaneous versus intravenous immunoglobulin therapy: a systematic review and narrative meta-synthesis. Clin Exp Med 26:88
⚠️ 본 글은 의학 정보 제공을 목적으로 하며, 정확한 진단·치료는 전문 의료기관에서 받으시기 바랍니다.